


刚刚,华裔科学家、哈佛大学教授刘如谦(david r. liu)团队再度登上《nature》。
他们证实,借助人工智能(AI)驱动的蛋白质从头设计,并耦合实验室连续进化技术,能够成功构建出针对非天然靶点、同时兼具卓越稳定性、高效催化活性与高度底物特异性的蛋白酶。
☞☞☞AI 智能聊天, 问答助手, AI 智能搜索, 多模态理解力帮你轻松跨越从0到1的创作门槛☜☜☜
论文链接:https://www.php.cn/link/982d2aa6e1fd12d2c2ecbd311220e066
具体而言,研究团队首先利用AI蛋白质设计工具ProteinMPNN对天然蛋白酶进行全序列重编程,在维持原有催化功能的前提下显著提升其热稳定性与可溶性表达水平;随后,以这些AI优化后的变体及原始天然酶为双起点,同步开展噬菌体辅助连续进化(PACE)实验。结果表明:经AI重构的BoNT/E不仅完整保留了对新底物的识别能力,还在表达量、构象稳定性及后续进化潜力方面全面超越野生型;AI重设计后的蛋白酶不仅成功弥补了PTEN靶向突变体原有的稳定性缺陷,还支撑筛选出更高活性的新底物切割变体,并最终演化出具备强选择性的ataxin-2靶向蛋白酶。
这种“先结构稳定化、再功能定向进化” 的两步协同策略,为蛋白质工程开辟了全新范式,有望大幅拓展蛋白酶类治疗药物的适用边界,成为开发新型酶制剂、靶向治疗蛋白及其他功能性生物分子的重要通用路径。
AI解锁了更优的进化起始态
传统定向进化通常直接以天然酶为起点,但这类天然模板普遍存在热稳定性差、表达量低、易失活等瓶颈;而经人工改造或常规进化获得的蛋白变体,又常面临活性衰减、特异性下降或折叠异常等问题。
本研究另辟蹊径——不依赖天然酶直接进化,而是先通过计算建模生成更稳健的蛋白骨架,再以此作为自动化连续进化的优质“种子”,高效筛选能识别并切割全新底物的功能变体。整体流程如下:
1. 计算驱动的稳定性重塑:生成强化版BoNT蛋白酶
团队选取BoNT/E作为模型体系,采用AI模型ProteinMPNN对其氨基酸序列进行系统性重设计:关键催化位点与底物结合残基被严格保留,其余位置则由AI算法重新采样生成最优序列,并借助AlphaFold2预测结构完整性。完成序列设计后,研究人员对多个AI变体进行了表达纯化与生化表征。数据显示,多数设计体仍能有效切割天然底物SNAP25,其中D1、D2和D3三个变体综合性能最优,最高催化效率达野生型的2.8倍。
为验证方法普适性,团队进一步使用另一设计工具PROSS对BoNT/E进行独立重设计,同样获得了表达增强、热稳定性提升且动力学参数改善的变体。该策略亦成功迁移至BoNT/F与BoNT/X等其他亚型,均实现了催化效能的维持甚至提升。
2. 连续进化赋能:解锁新底物识别能力
在获得高稳定性AI变体后,团队对比评估了AI设计体D3与野生型BoNT/E作为PACE进化起点的表现差异。他们设定三类难度递增的新底物(编号415、413与412),分别启动多轮PACE筛选,旨在富集具备更强切割能力的突变体。结果显示:D3在全部三类底物上均展现出更高的进化成功率,尤其在最难切割的底物412中优势最为突出。互换突变实验进一步揭示:部分关键有益突变仅在AI设计背景下发挥功能,在野生型酶中则完全失效。
在此基础上,团队进一步挑战更具临床意义的目标——使BoNT/E获得切割ataxin-2的能力。他们分别以野生型与AI重设计蛋白酶为起点,通过PACE筛选ataxin-2特异性切割变体,并借助体外酶学分析与细胞内功能验证确认其活性与选择性。
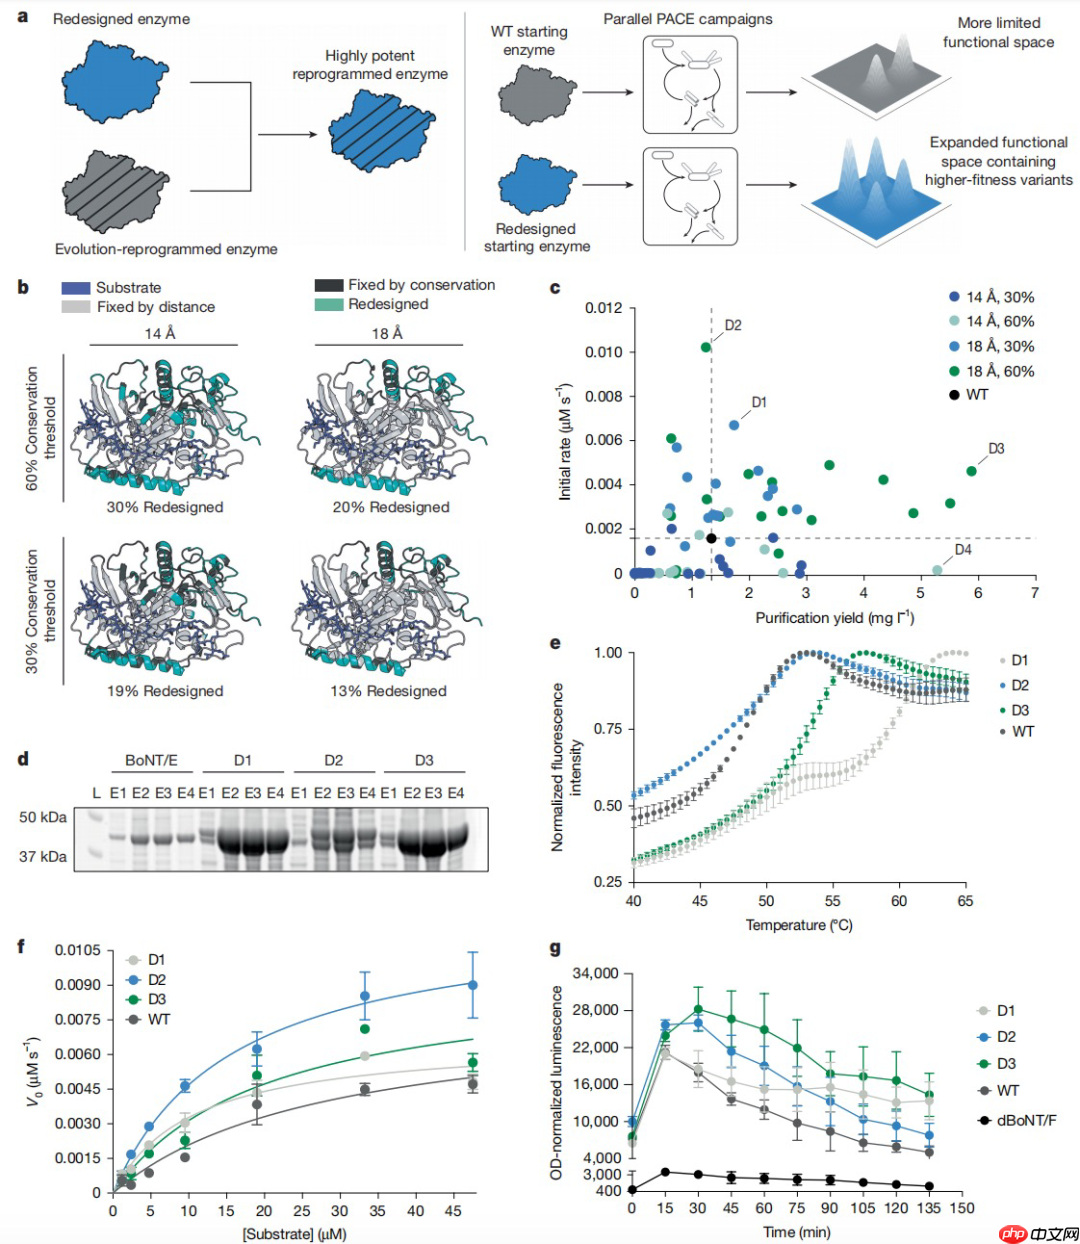
图|整合AI序列设计与连续进化的全流程示意图,以及BoNT/E蛋白酶稳定性重设计成果概览。
超越天然模板的工程优势
总体来看,基于AI重构的蛋白酶不仅维持了对新底物的精准识别能力,还在表达产量、构象鲁棒性及进化可塑性三大维度实现全面提升。该策略既修复了PTEN靶向变体原有的稳定性短板,也助力筛选出更高活性的新底物变体,并最终催生出具有临床潜力的ataxin-2高特异性切割酶。主要发现包括:
1. 优化已有进化蛋白酶性能
AI重设计可显著增强已进化蛋白酶的可生产性与稳定性。此前开发的PTEN切割变体E(4130)A2存在表达量低、易聚集等缺陷。研究团队将该变体中的关键突变整合至AI设计体D1、D2与D3中。结果证实,融合后的蛋白酶不仅保留了PTEN切割活性,且未恢复对天然底物SNAP25的切割能力。
更重要的是,其表达水平大幅提升:在大肠杆菌中,D1–D3融合体表达量提高2.2–5.2倍;在HEK293T细胞中,D2与D3融合体表达量增幅超24倍,对应PTEN切割产物分别增加4.5倍与3.9倍。
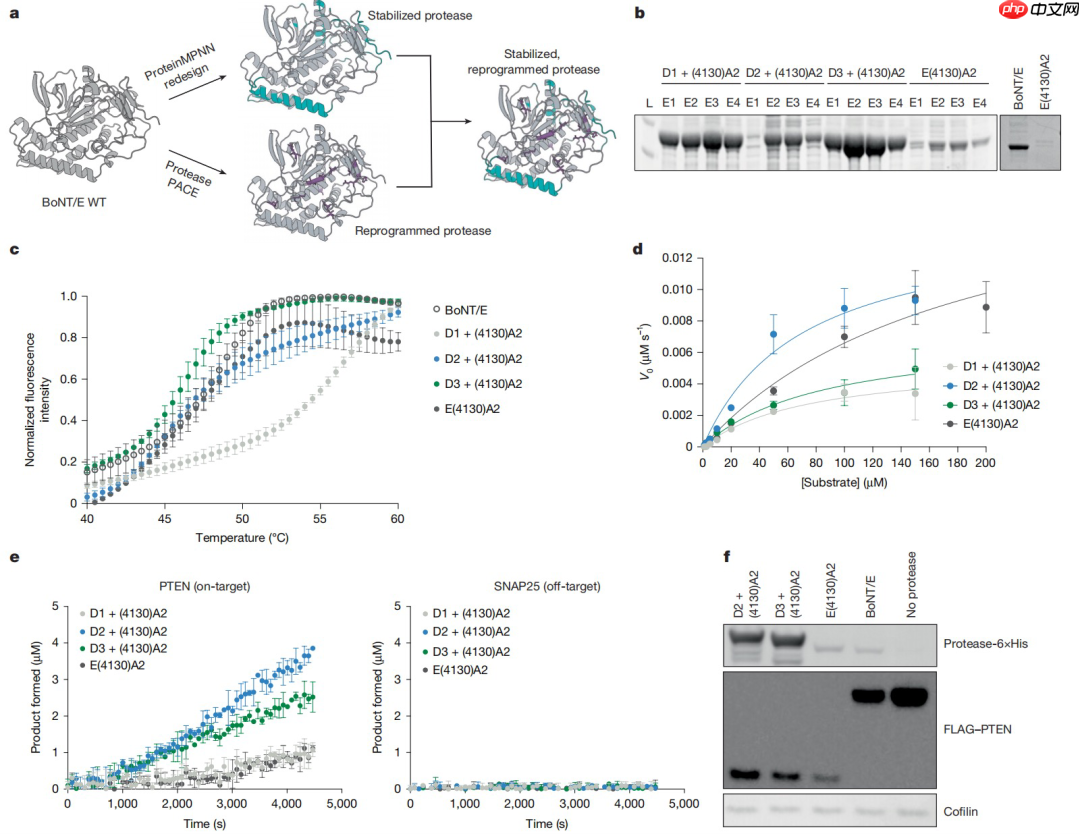
图|将PACE筛选所得BoNT/E突变与ProteinMPNN重设计成果融合,显著提升PTEN靶向BoNT/E变体的细胞内表达水平与切割效率。
2. 提升新底物适应性进化效率
AI设计起点显著加快新底物适配进程。团队对比D3与野生型BoNT/E在底物415、413与412上的PACE筛选表现。数据表明,D3更易获得高活性进化体,说明稳定性提升切实增强了后续功能进化的可行性。
在最具挑战性的底物412上,D3的优势尤为明显:野生型四组平行实验中仅有两组成功获得有效变体,而D3四组全部成功;其PACE回路激活强度达16–20倍,约为野生型变体的10倍。突变互换实验再次佐证:某些关键突变仅在AI设计骨架中具备功能兼容性。
3. 拓展蛋白酶功能进化空间
AI重设计使蛋白酶得以探索天然酶无法触及的序列—功能关系区域。以底物413为例,D3在进化过程中富集了一批在野生型背景中极少出现的突变组合,表明AI优化后的蛋白骨架打开了全新的功能进化路径。
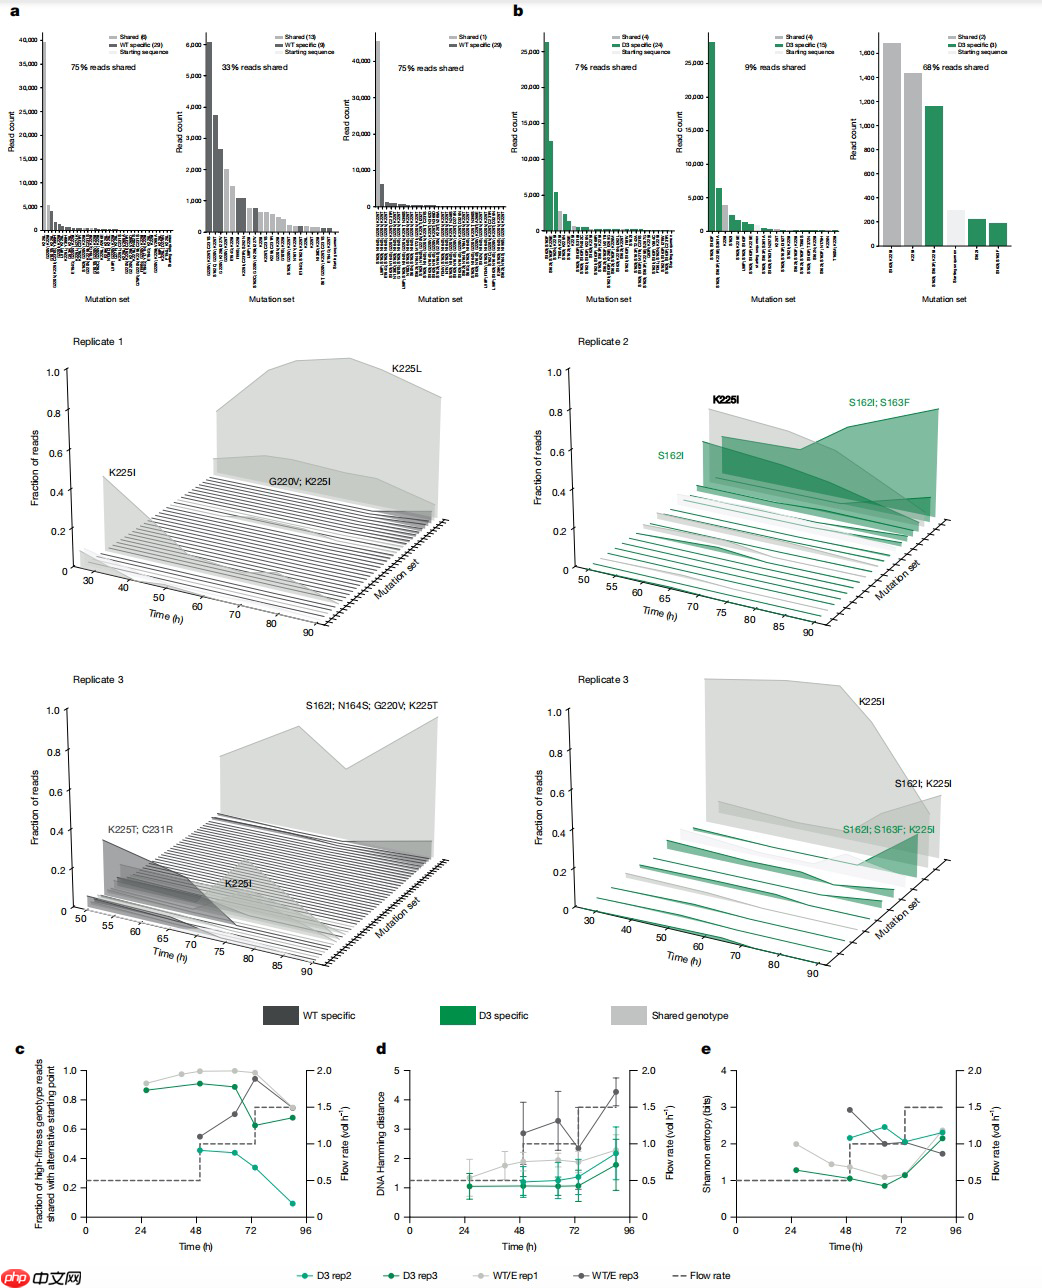
图|不同进化起点下的基因型分布特征,及中等难度底物进化过程中起始背景依赖型突变组合动态变化。
为进一步验证该策略的泛化能力,团队还测试了两种替代设计起点:ProteinMPNN生成的D4变体与PROSS设计的PROSS1变体。结果显示,二者均能在三类新底物上顺利完成PACE筛选,并形成区别于野生型与D3的独特进化谱系。
值得注意的是,D4初始催化速率较野生型低约20倍,但经进化后仍达到与其他AI设计起点相当甚至更高的活性水平。总体而言,三种AI设计起点所衍生的进化变体,其最终活性均优于野生型起点所得结果。
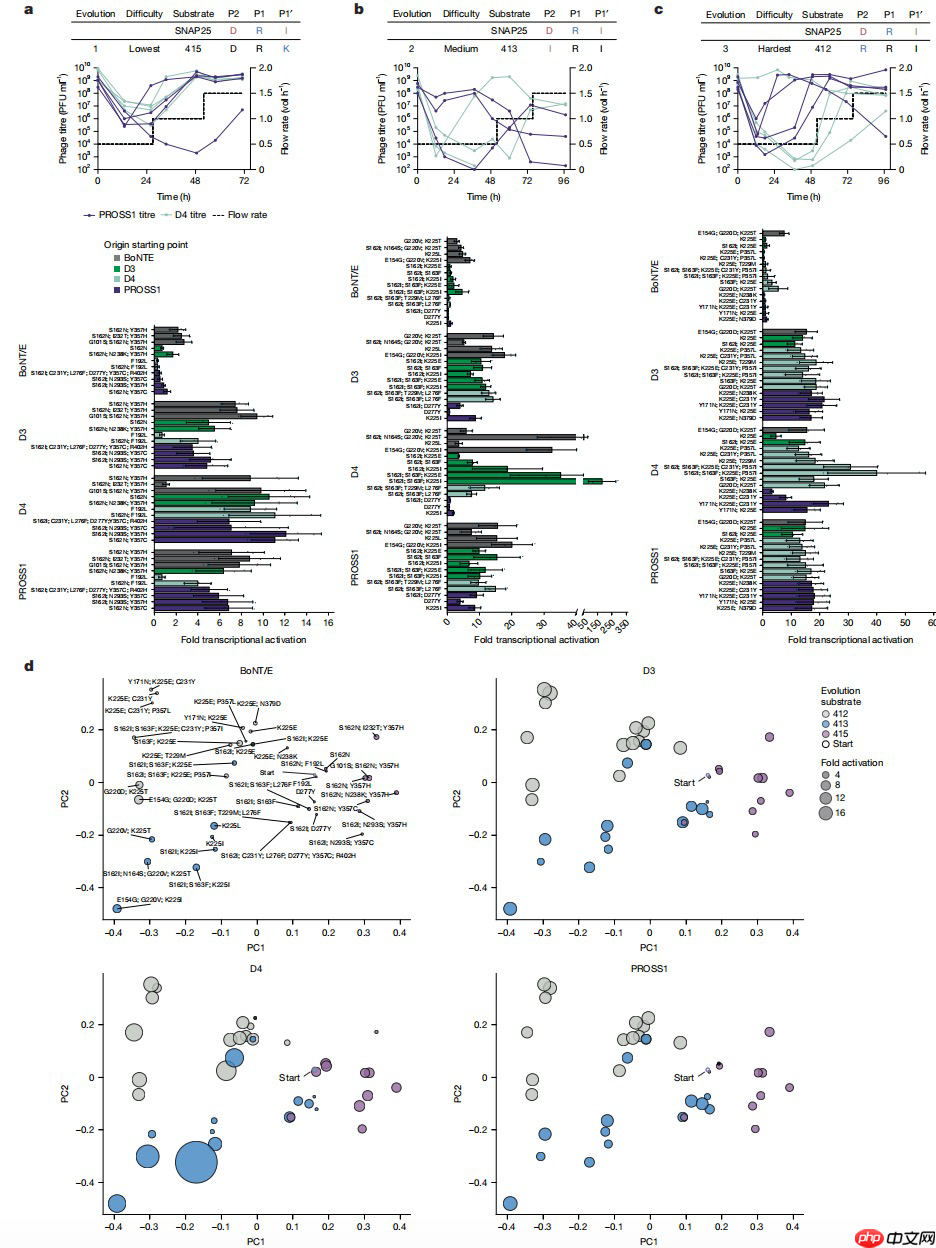
图|多种AI重设计起点的PACE进化结果对比,及其在不同起始背景下对进化基因型功能影响的系统评估。
4. 成功进化ataxin-2靶向蛋白酶
AI重设计起点催生出更快、更专一的ataxin-2切割酶。团队通过PACE平行比较野生型与AI设计起点的进化产出。ataxin-2是一种与脊髓小脑共济失调等神经退行性疾病密切相关的致病蛋白,而BoNT/E原本对其无切割活性。研究人员选定其1181–1201残基区段作为新切割位点——该区域与病理性蛋白聚集体形成密切相关。
相较野生型起点产生的变体,D3起点进化所得变体切割ataxin-2的速度提升1.4–1.7倍,且未检测到对SNAP25的交叉切割;在HEK293T细胞中,AI起点变体表达量更高,ataxin-2切割产物产量显著上升,副反应产物亦明显减少。
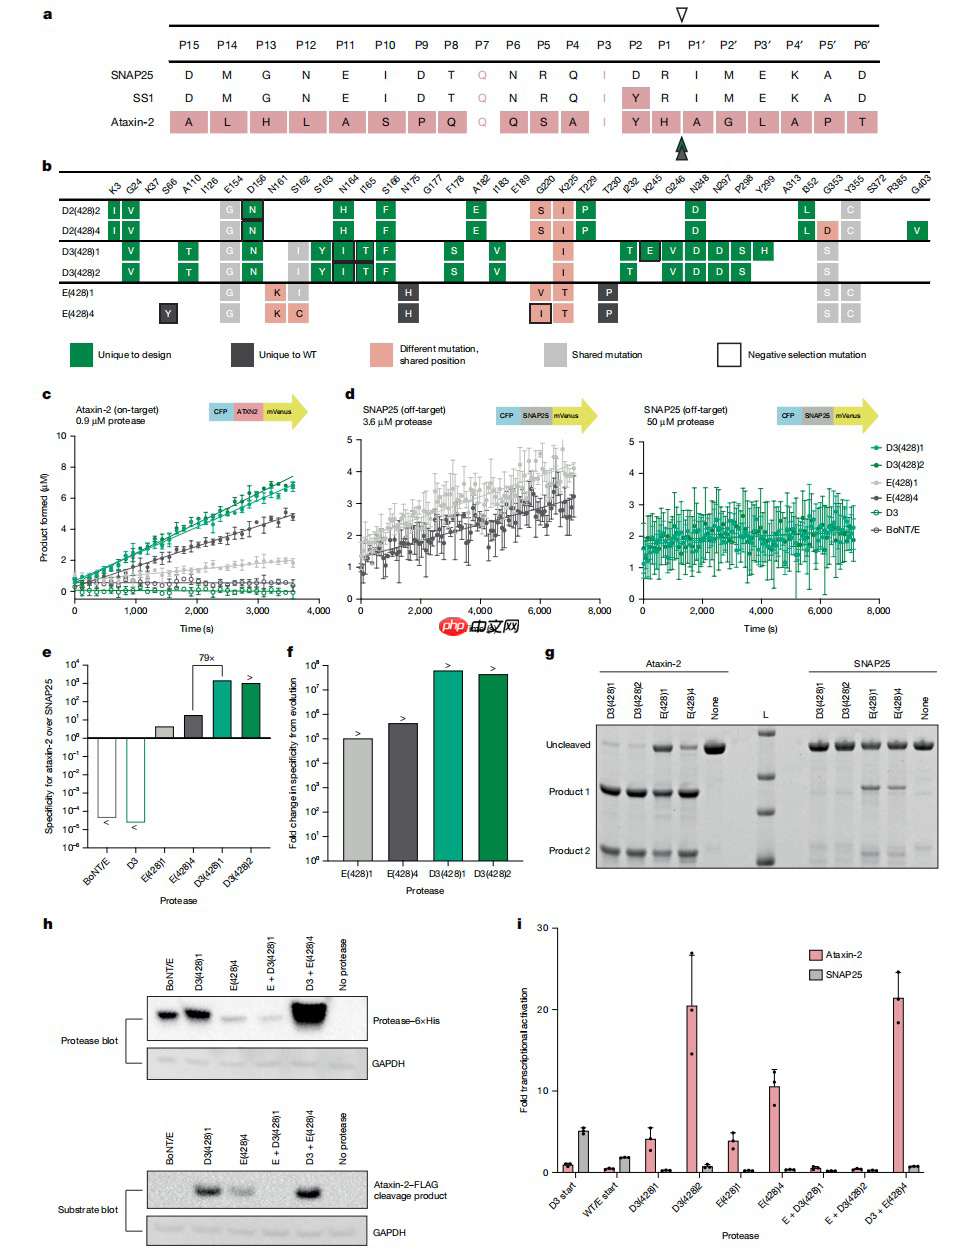
图|AI重设计蛋白酶与野生型蛋白酶分别重编程后,对治疗相关非天然靶标(ataxin-2)与天然靶标(SNAP25)的选择性切割能力对比。
当前局限与未来挑战
尽管该策略展现出广阔应用前景,研究团队亦坦诚指出若干待解问题:
首先,本工作聚焦于BoNT/E蛋白酶体系,其特性决定了该方法特别适用于可通过序列重设计显著提升稳定性、且功能易于在PACE中被正向筛选的蛋白类型。类似优势是否适用于更广泛的酶家族或其他功能蛋白,尚需跨体系验证。
其次,目前获得的ataxin-2靶向蛋白酶仍处于工具酶验证与概念性应用阶段。团队指出,此类AI+进化联合设计的酶可用于探究在蛋白层面清除致病性ataxin-2包涵体是否足以缓解神经退行性病变表型,相关体内功效与机制研究有待深入展开。
最后,对于面向临床转化的蛋白酶重编程而言,安全性始终是不可逾越的红线。尤其在靶向非天然底物时,除需持续提升目标切割效率外,还必须最大限度抑制对天然底物的脱靶切割,并系统评估潜在的脱靶效应、细胞毒性、体内递送效率及免疫原性风险。
更多技术细节请参阅原文。
本文来自微信公众号“学术头条”(ID:SciTouTiao),作者:夏千斯,36氪经授权发布。














